- DOI: 10.31509/2658-607x-202693-196
- УДК 574.472 519.245
Видовое и структурное разнообразие долинных лесов гор Каркаралы (Центральный Казахстан)

© 2026 Н. В. Иванова1*, М. Ю. Ишмуратова2, М. П. Шашков2
1ИМПБ РАН — филиал ИПМ им. М. В. Келдыша РАН,
Россия, Московская обл., 142290 г. Пущино, ул. проф. Виткевича, д. 1
2Карагандинский национальный исследовательский университет им. ак. Е. А. Букетова,
Республика Казахстан, 100028 г. Караганда, ул. Университетская, д. 28/3
*E-mail: natalya.dryomys@gmail.com
Поступила в редакцию: 10.06.2026
После рецензирования: 26.06.2026
Принята к печати: 17.08.2026
Леса Казахского мелкосопочника (Сарыарка) – это островные боры и производные мелколиственные древостои, в напочвенном покрове которых присутствуют бореальные и другие лесные виды, находящиеся на значительном удалении от своего основного ареала. Цель данной работы – количественная оценка видового и структурного разнообразия долинных лесов Каркаралинского горного массива. Для этого исследованы две группы сообществ: (1) леса в межгорной долине Кендара и (2) леса, произрастающие снаружи Каркаралинского горного массива. Выполнено 33 геоботанических описания в лесах первой группы и 14 – в лесах второй группы. Оценку альфа-разнообразия проводили на основе показателя видовой насыщенности и рандомизационных тестов. Для анализа гамма-разнообразия рассчитывали числа Хилла и строили кумулятивные кривые разнообразия. Бета-разнообразие оценивали на основе расстояния Жаккара. Структурное разнообразие – на основе разнообразия эколого-ценотических групп (ЭЦГ). Для каждой группы рассчитывали индикаторные значения видов. Показано, что исследуемые группы сообществ хорошо разделяются в ординационном пространстве. В лесах из долины Кендара видовое богатство травянистого яруса значимо выше по сравнению с лесами, произрастающими снаружи горного массива (24 ± 5 и 21 ± 5 видов соответственно). По показателям гамма-разнообразия леса из долины Кендара были несколько беднее (113 и 118 видов соответственно); значимые различия показаны для эффективных чисел видов для индексов Шеннона и Симпсона. Расстояние Жаккара между анализируемыми группами описаний составило 0.63. Оценка структурного разнообразия показала, что во всех сообществах преобладали лугово-степные, бореальные и неморальные виды. В долине Кендара бореальные и неморальные виды суммарно составляли 52%; в лесах снаружи горного массива их участие снижалось за счет увеличения доли видов нитрофильной, лугово-степной, боровой и водно-болотной ЭЦГ. Для лесов второй группы показано большее разнообразие ЭЦГ среди значимых индикаторных видов. Полученные результаты подтверждают бо́льшую сохранность лесов в долине Кендара. Обсуждаются вопросы потенциального влияния современных инвазий чужеродных видов дождевых червей (Lumbricidae) и клена Acer negundo на экосистемы каркаралинских лесов.
Ключевые слова: числа Хилла, эколого-ценотические группы, Казахский мелкосопочник, Каркаралинский государственный национальный природный парк, Acer negundo
Казахстан расположен в центре Евразии, в области засушливого, континентального климата умеренного пояса. Страна лежит в нескольких природных зонах (лесостепь, степь и пустыня) и включает разнообразные регионы с богатым растительным миром (Гвоздецкий, Михайлов, 1987; Рачковская, 2016). Лесистость Республики составляет не более 5%, леса встречаются во всех климатических зонах (Данчева, Залесов, 2024). Леса, произрастающие в междуречье Оби и Иртыша, являются плейстоценовыми реликтами некогда единого массива, связанного с таежными лесами Западной Сибири и горными и предгорными лесами Алтая. С этими лесными «оазисами» связан комплекс бореальных и других лесных видов растений, находящихся на значительном удалении от их основного ареала (Грибанов, 1960; Горчаковский, 1987; Куприянов, 2020).
Сведения о составе, структуре и динамике этих уникальных лесных массивов до сих пор носят отрывочный характер. В монографии П. Л. Горчаковского (1987) приведена типология и характеристика напочвенного покрова островных боров, однако почти все исследованные им леса расположены в северной части Казахстана (Акмолинская и Павлодарская области). Имеющиеся в этой работе сведения о борах Центрального Казахстана (Карагандинская и Улытауская области) ограничены территорией Каркаралинского горно-лесного массива и охватывают в основном горные типы леса. Доступные в литературе исследования лесов Центрального Казахстана в большей степени посвящены изучению их флористического разнообразия (Ишмуратова и др., 2016, 2024; Куприянов, 2020) и распространения бореальных видов (Переверзева, Леонова, 2024). Количественные оценки видового и структурного разнообразия лесов до сих пор единичны (Дикарева, Леонова, 2014; Ivanova, Shashkov, 2025). Поэтому целью данной работы стал количественный анализ видового и структурного разнообразия долинных лесов, произрастающих в Каркаралинском горно-лесном массиве.
МАТЕРИАЛЫ И МЕТОДЫ
Район исследований. Каркаралинский государственный национальный природный парк расположен в северо-восточной части Карагандинской области, ~ 200 км восточнее г. Караганда. Парк создан в 1998 г. и включает пять обособленных горно-лесных массивов, крупнейшим из которых является Каркаралинский (рис. 1). Общая площадь парка составляет 112120 га, из которых 40341 га покрыты лесами. Основными горообразующими породами являются граниты, подвергшиеся сильному выветриванию (Гвоздецкий, Михайлов, 1987); наивысшая точка – гора Жиренсакал (1403 м над ур. м.). На склонах встречаются родники, которые вместе с атмосферными осадками питают многочисленные ручьи. Часть водотоков имеет временный характер и существует только во влажный период (Горчаковский, 1987). Почвы района представлены главным образом темно-каштановыми и горно-каштановыми. Небольшие участки лугово-черноземных почв связаны с горными массивами и приурочены к речным долинам. В межгорных долинах встречаются выщелоченные черноземы, в понижениях распространены солонцы и солончаки (Дикарева, Леонова, 2014). Климат района исследований резко-континентальный (Максутова и др., 2005). Среднегодовая температура воздуха + 3.6℃, годовая сумма осадков – 293 мм (Погода и климат, 2025).
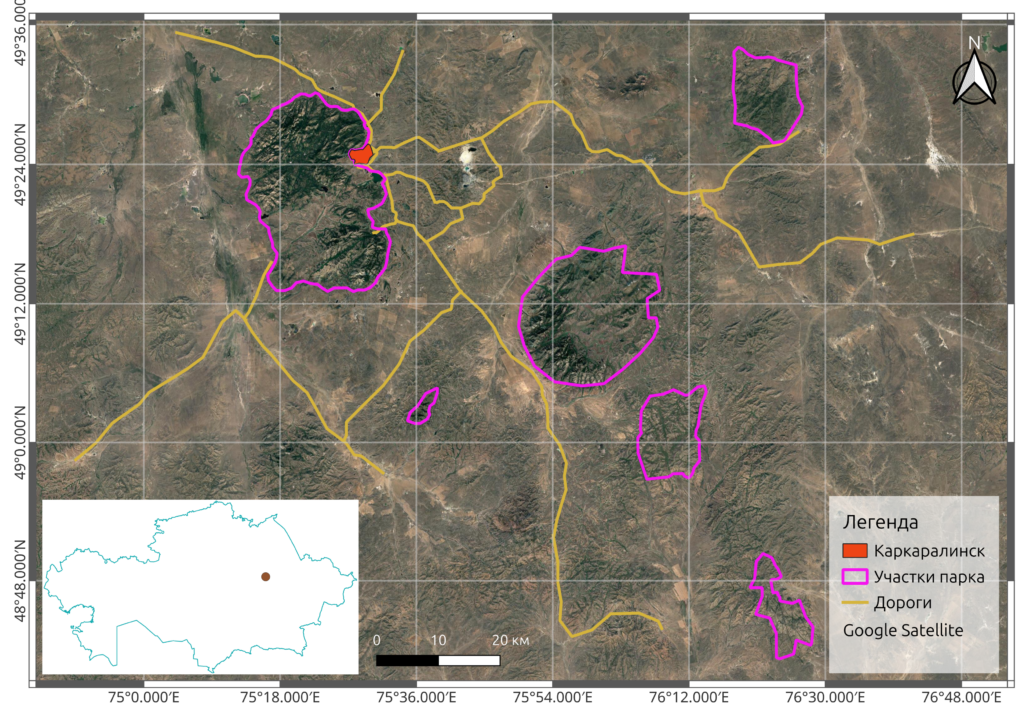
Рисунок 1. Карта расположения участков Каркаралинского государственного национального природного парка
Интенсивная эксплуатация Каркаралинских лесов, по всей видимости, началась в XIX в. после основания здесь в 1824 г. военного укрепления Российский Империи, а затем, в 1827 г., казачьей станицы. В 1849 и 1850 гг. для усиления поселения в станицу были переселены украинские казаки, с 1869 г. Каркаралинск получил статус города (Козина, 2006). В 1884 г. было учреждено Каркаралинское лесничество. Заготовка леса в тот период велась в т.ч. для нужд строительства, что уже к началу XX в. привело к значительному сокращению лесных территорий (Горчаковский, 1987; Попов, Рязанцев, 2012). Следующий этап масштабных рубок пришелся на середину XX в. – период освоения целины. В это время были вырублены практически все старовозрастные сосняки в межгорных долинах, низкобонитетные сосновые древостои сохранились в основном по склонам хребтов. С 1960-х гг. наряду с интенсификацией лесозаготовок сокращение лесопокрытых площадей происходило за счет отвода лесных земель под строительство домов отдыха и летних оздоровительных лагерей (Попов, 2008). Лесозаготовительная деятельность велась вплоть до создания национального парка в 1998 г.
Существенное влияние на леса оказывал и пирогенный фактор. В Каркаралинских лесах повсеместно отмечены следы пожаров разной давности (Ауельбекова и др., 2017). В XX в. полностью выгорали Кентский и Бахтинский (дважды) горно-лесные массивы (Горчаковский, 1987).
Выпас домашнего скота также вносил важный вклад в состояние лесного покрова. Согласно имеющимся в литературе данным, наиболее интенсивно следы этих воздействий проявлялись по окраинам лесных массивов (Горчаковский, 1987; Попов, 2008).
Сбор полевых данных. Материал собран в Каркаралинском горно-лесном массиве. Обследованы сосновые и мелколиственные березовые и осиновые леса, произрастающие снаружи горного массива, а также сосняки и смешанные сосново-мелколиственные и лиственные леса в межгорной долине Кендара (рис. 2).
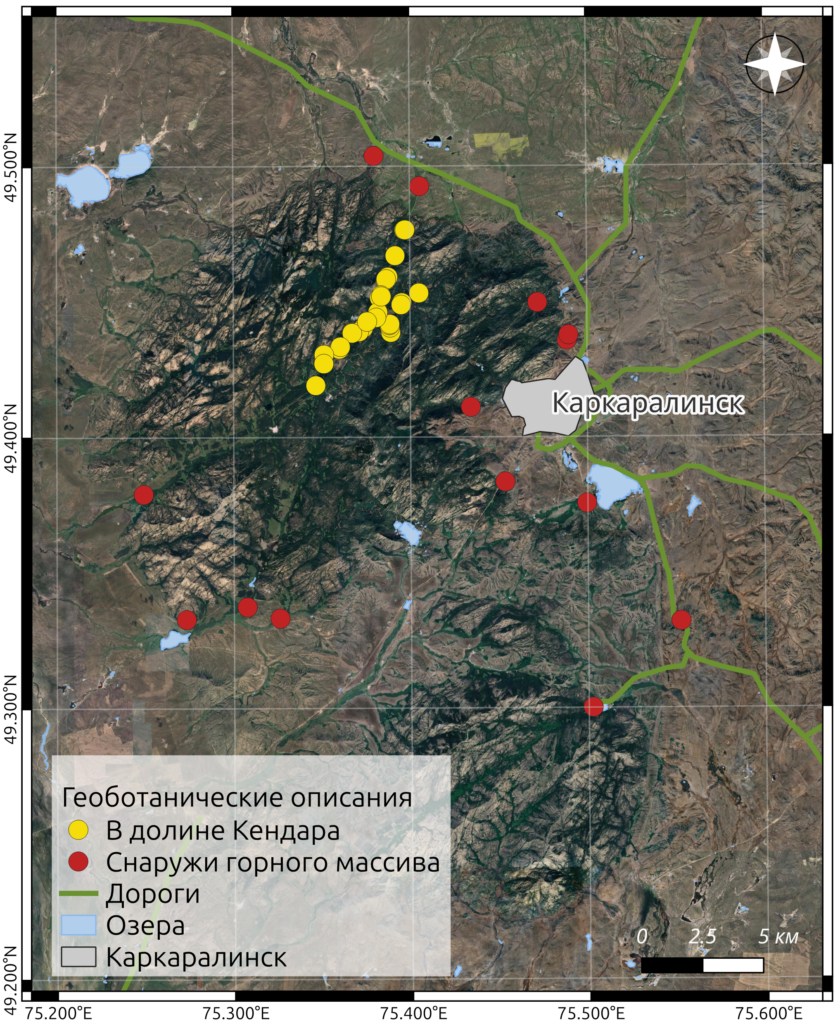
Рисунок 2. Карта расположения пробных площадей, исследованных в Каркаралинском горном массиве
Межгорная долина Кендара протяженностью ~ 16 км насквозь пересекает северную часть Каркаралинского горного массива в направлении с северо-востока на юго-запад. Ширина долины варьирует от 100 м в северо-восточной до 1500 м в центральной и юго-западной частях. Территория ограничена для посещения. Разрешен сбор грибов и ягод, проезд на личном автотранспорте и выпас скота запрещены. Нами обследована северо-восточная часть долины от ее начала (кордон Александровский ключ) до центра (кордон Аюшат), а также отвилок от озера Кендара в направлении кордона 8-й километр. На этой территории произрастают сосновые, а также смешанные и мелколиственные леса. Юго-западная часть долины Кендара от кордона Аюшат и до ее окончания (кордон Коктобе) представляет собой сочетание лесных культур сосны (Pinus sylvestris L.) и карагача (Ulmus pumila L.) разного возраста и березово-осиновых колочных лесов, приуроченных к руслам постоянных или временных водотоков, и образующих более-менее непрерывный лесной массив шириной от 100 до 300 м.
Леса, произрастающие снаружи горного массива, в основном мелколиственные. Небольшие по площади фрагменты долинных сосновых лесов сохранились в окрестностях г. Каркаралинск и в урочище Комиссаровка. Все исследованные леса снаружи горного массива открыты для посещения, вблизи некоторых функционируют туристические стоянки. Во всех лесах ведется выпас скота.
Геоботанические описания выполняли на пробных площадях 100 м2 с указанием обилия каждого вида по шкале Браун-Бланке в основных ярусах растительности (A – древесного, B – подроста и подлеска, C – травянистого, D – мохового-лишайникового) и общего проективного покрытия ярусов. Всего сделано 47 описаний, из которых 33 в долине Кендара и 14 снаружи горного массива. Все собранные описания доступны через репозиторий Global Biodiversity Information Facility (Ishmuratova, Ivanova, 2024; Ivanova et al., 2026). В долине Кендара выборочно измерен возраст деревьев сосны при помощи возрастного бура.
Анализ данных проводили в среде R (R Core …, 2025). Сначала выполняли неметрическое многомерное шкалирование описаний травянистого яруса по алгоритму, реализованному в функции metaMDS() пакета vegan (Oksanen et al., 2024). Затем анализировали показатели альфа-, гамма- и бета-разнообразия и по описаниям из долины Кендара, и снаружи горного массива. Поскольку выборки сильно различались по числу описаний, для корректной оценки видового разнообразия использовали специальные статистические методы, которые позволяют получить корректные оценки биоразнообразия вне зависимости от объема сравниваемых выборок (Chao et al., 2014; Смирнов и др., 2014; Ханина и др., 2016). Для оценки альфа-разнообразия строили ящиковые диаграммы (boxplots) для показателей видовой насыщенности. Значимость различий оценивали при помощи рандомизационных тестов (Manly, 2007), с коррекцией p-значений на множественность сравнений. Использовали функцию c2m() пакета rich (Rossi, 2011). Для анализа гамма-разнообразия при помощи функций пакета iNEXT (Hsieh et al., 2016) рассчитывали числа Хилла: видовое богатство (q = 0), эффективное число видов для индекса Шеннона (q = 1) и эффективное число видов для индекса Симпсона (q = 2), на основе которых строили кумулятивные кривые разнообразия с 95%-м доверительными интервалами для 42 описаний (утроенный объем выборки снаружи горного массива). Для оценки бета-разнообразия использовали меру расстояния Жаккара, поскольку она менее чувствительна к объему выборки (Смирнов и др., 2014). Визуализацию выполняли при помощи диаграмм Венна (пакет VennDiagram). Индикаторные значения видов в группах рассчитывали по методу, реализованному в функции multipatt() пакета Indicspecies (De Cáceres, Legendre, 2009).
Структурное разнообразие оценивали на основе разнообразия эколого-ценотических групп (ЭЦГ). Использовали следующие ЭЦГ, предложенные в работах В. Э. Смирнова и др. (2006, 2008): Br – бореальная, Nm – неморальная, Nt – нитрофильная, Pn – боровая, Md – лугово-степная, Wt – водно-болотная, Olg – олиготрофная, Ad – адвентивная. Расчеты проводили с учетом обилия видов.
РЕЗУЛЬТАТЫ И ОБСУЖДЕНИЕ
Согласно материалам собранных описаний, в древостоях всех лесов, описанных в долине Кендара, преобладала или участвовала сосна (Pinus sylvestris L.). В составе смешанных древостоев помимо сосны участвовали береза (Betula pendula Roth) и осина (Populus tremula L.). В сосняках часто присутствовал второй несомкнутый подъярус из березы и сосны. По результатам измерения средний возраст сосны составил 124 года. Самое молодое учтенное дерево имело возраст 75 лет, самое старое – 210 лет. Проективное покрытие древесного яруса составляло от 50 до 100% (среднее – 67.9%). В ярусе B отмечен подрост сосны, березы и осины. В подлеске чаще всего встречались Prunus padus L., Salix cinerea L., Crataegus sanguinea Pall, Cotoneaster multiflorus Bunge, Rosa acicularis Lindl., Rosa spinosissima L. и Rubus idaeus L. Проективное покрытие яруса варьировало от 1 до 50% (среднее – 15.7%). В травянистом ярусе сочетались лесные и лугово-степные виды. Из бореальных обычно встречались Chamaenerion angustifolium (L.) Scop., Equisetum sylvaticum L., Galium boreale L., Clematis sibirica (L.) Mill., Orthilia secunda (L.) House, Pyrola rotundifolia L. и Rubus saxatilis L.; из неморальных видов часто отмечены Melica nutans L., Geum urbanum L., Elymus caninus (L.) L., Dactylorhiza fuchsii (Druce) Soó, Anthriscus sylvestris (L.) Hoffm., Dryopteris carthusiana (Vill.) H.P.Fuchs. Из нитрофильных видов в большинстве описаний учтена Filipendula ulmaria (L.) Maxim, часто встречались Lysimachia vulgaris L. и Urtica dioica L. Среди лугово-степных видов чаще всего встречались Agrimonia pilosa Ledeb., Angelica sylvestris L., Dactylis glomerata L., Fragaria vesca L., Geranium pratense, Kadenia dubia (Schkuhr) Lavrova & V.N.Tikhom., Ranunculus polyanthemos L., Sanguisorba officinalis L., Serratula coronata L. и Vicia sepium L. Проективное покрытие яруса от 25 до 100%, среднее – 75.9%. Мохово-лишайниковый ярус, как правило, не выражен. В более старых сосновых лесах мхи отмечены на валеже и корневых лапах сосен.
Леса снаружи горного массива приурочены к руслам постоянных или временных водотоков. Древостои одноярусные, березовые, осиновые, или смешанные, редко – сосновые. Проективное покрытие древесного яруса от 40 до 80%. В кустарниковом ярусе чаще всего встречались Crataegus sanguinea, Cotoneaster multiflorus, Lonicera tatarica L., Salix rosmarinifolia L., Rosa acicularis и Ribes nigrum L. Проективное покрытие яруса невелико и в среднем составило 10%. В травянистом ярусе из бореальных видов широко распространены Rubus saxatilis, Pyrola rotundifolia, Galium boreale, Clematis sibirica. В большинстве описаний отмечены Anthriscus sylvestris (L.) Hoffm. и Filipendula ulmaria. Среди луговых видов в исследованных лесах чаще всего встречались Sanguisorba officinalis L., Ranunculus polyrhizos Stephan ex Willd. и Geranium pratense L. Проективное покрытие яруса, как правило, составляло 60–100%, на участках с интенсивным выпасом – не более 30%. Мохово-лишайниковый ярус не выражен. Следы выпаса домашнего скота отмечены во всех исследованных лесах.
Результаты ординационного анализа показали, что описания из долины Кендара хорошо отделяются от описаний, выполненных снаружи горного массива (рис. 3). Описания из Кендары образуют плотное облако, в то время как описания, выполненные снаружи Каркаралинского горного массива, расположены в ординационном пространстве разреженно. Это позволяет предположить, что последние более вариабельны по абиотическим условиям и, вероятно, видовому разнообразию.
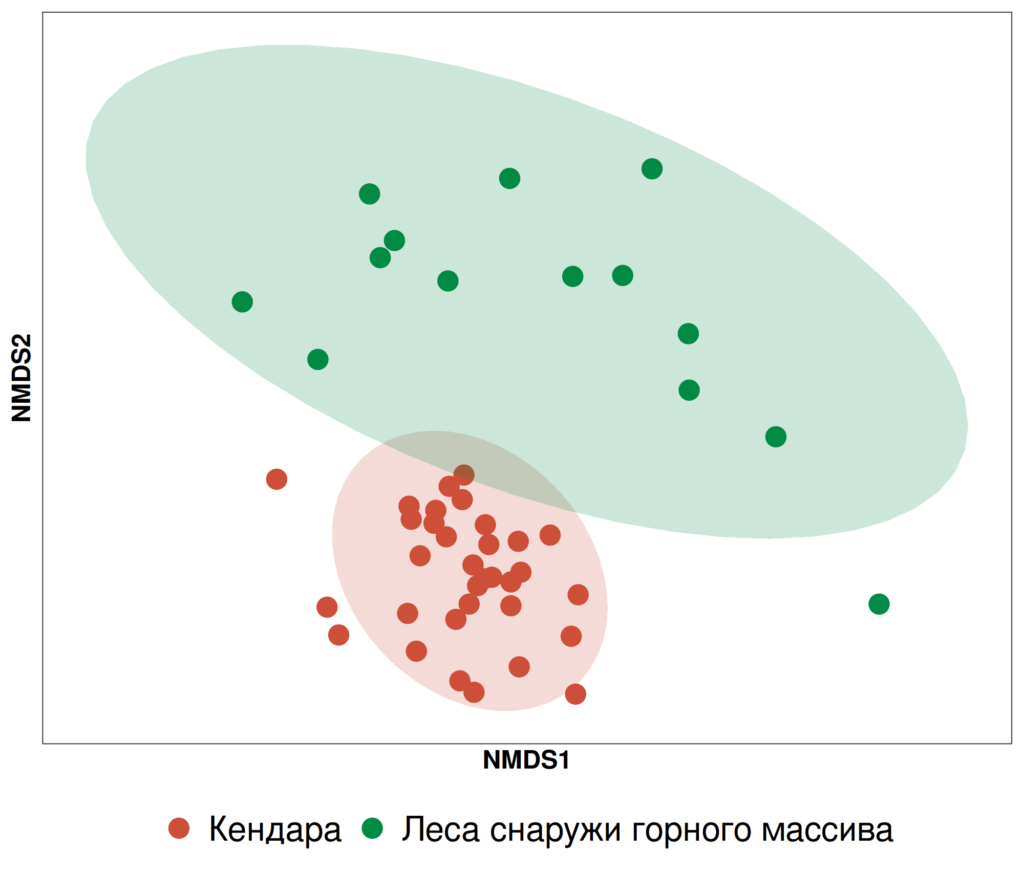
Рисунок 3. Ординационная диаграмма геоботанических описаний лесных сообществ, исследованных в Каркаралинском горно-лесном массиве
Результаты оценки альфа-разнообразия показали, что видовая насыщенность в описаниях из Кендары составила 24 ± 5 видов (± стандартное отклонение), на площадях снаружи горного массива – 21 ± 5 видов (рис. 4). Пермутационные сравнения показали, что разница статистически значима (P = 0.04 при 9999 перемешиваниях).
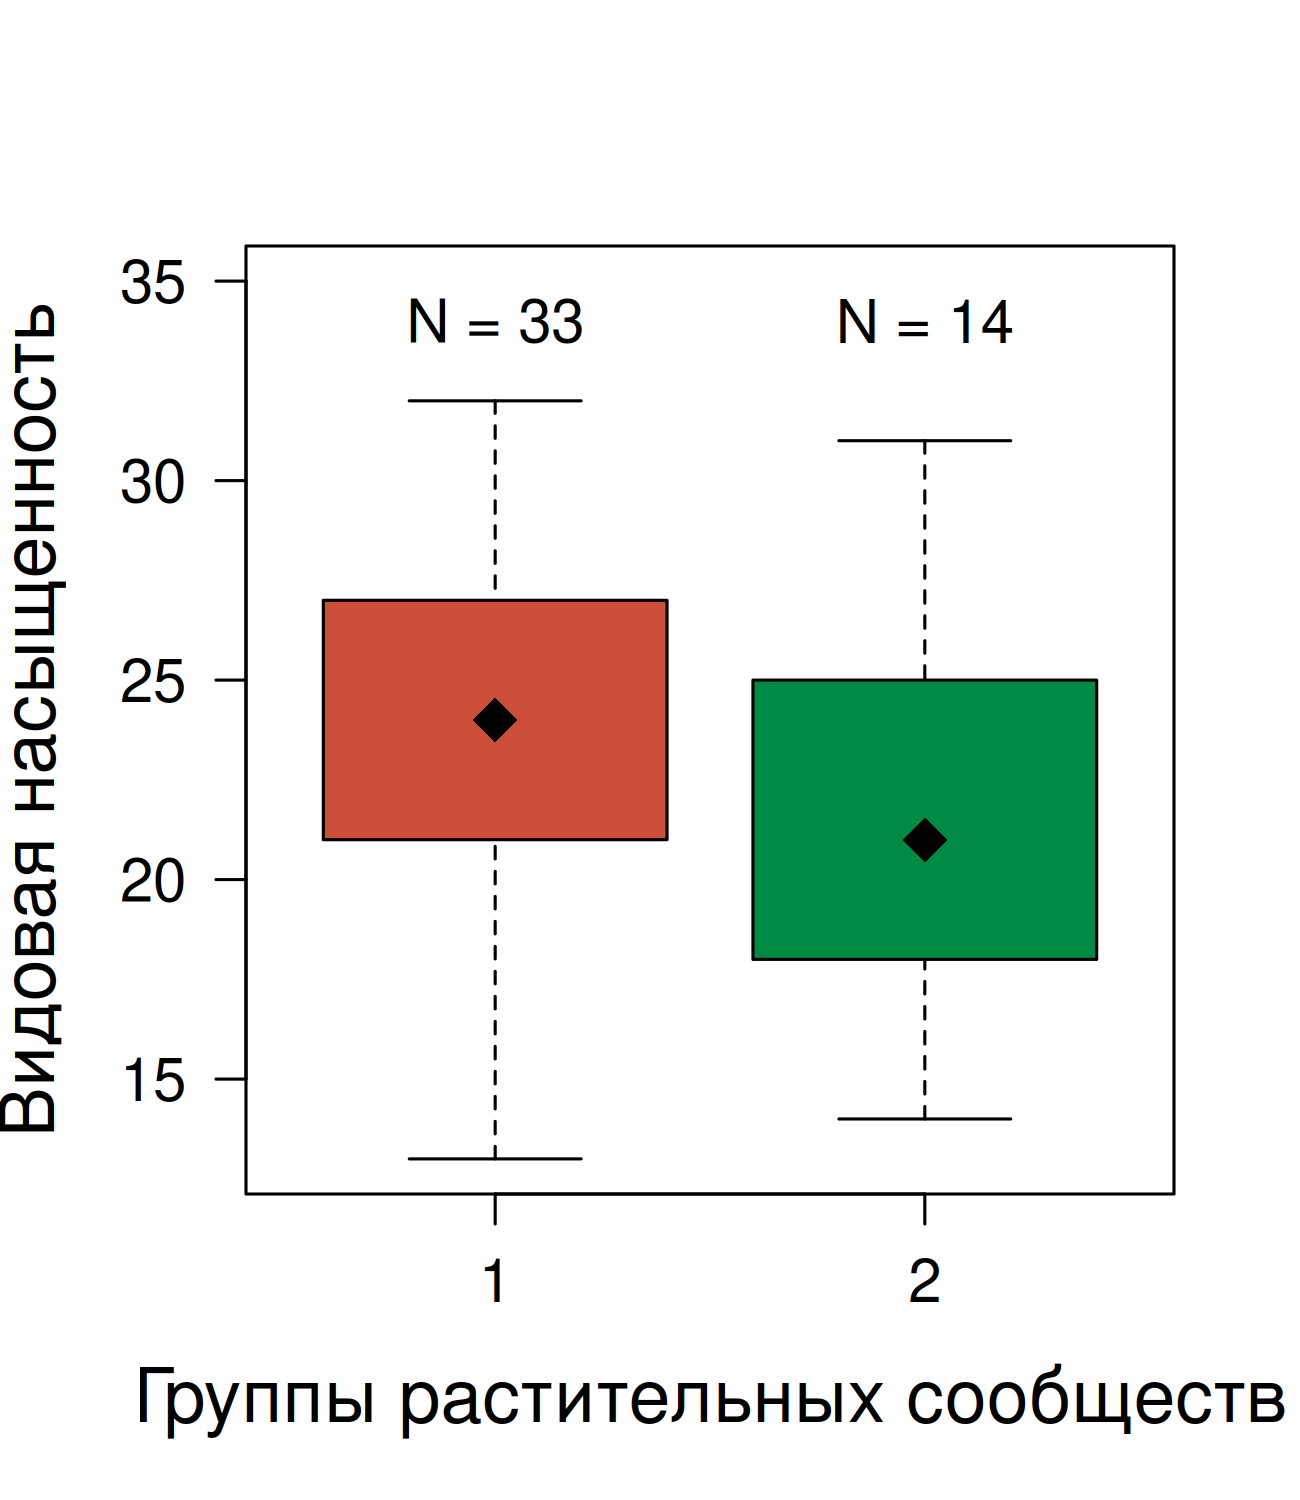
Рисунок 4. Видовая насыщенность в описаниях из долины Кендара (1) и снаружи Каркаралинского горного массива (2). «Ящики» – 1–3 квартиль, «усы» – минимальное и максимальное значения, точки внутри – средние.
Результаты оценки гамма-разнообразия при помощи чисел Хилла показали, что сообщества снаружи Каркаралинского горного массива более богаты по числу видов по сравнению с лесами в долине Кендара (рис. 5, табл. 1). Значимые различия показаны для эффективных чисел видов для индексов Шеннона и Симпсона.
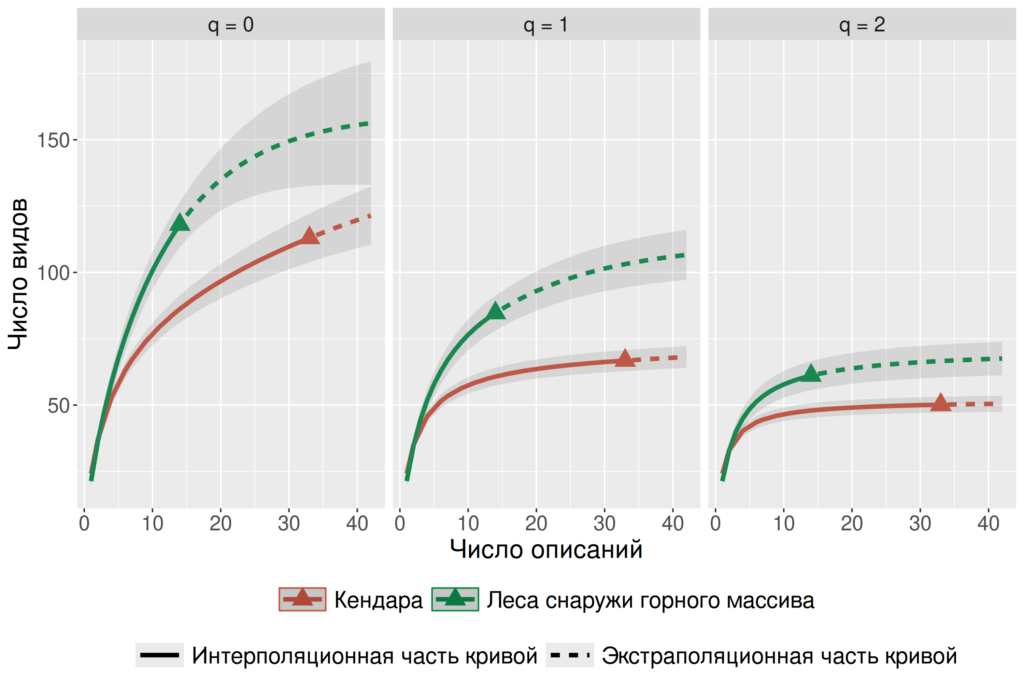
Рисунок 5. Кумулятивные кривые разнообразия с 95%-ными доверительными интервалами для исследуемых групп описаний лесов Каркаралинского горного массива
Таблица 1. Экстраполированные оценки (1), нижние (2) и верхние (3) границы доверительных интервалов видового богатства сосудистых растений (q = 0), эффективных чисел видов для индекса Шеннона (q = 1) и индекса Симпсона (q = 2), рассчитанные для описаний из долины Кендара (1*) и лесов снаружи Каркаралинского горного массива (2*)
| Группа | Наблюдаемое видовое богатство | q = 0 | q = 1 | q = 2 | ||||||
| 1 | 2 | 3 | 1 | 2 | 3 | 1 | 2 | 3 | ||
| 1* | 113 | 121.4 | 112.4 | 130.5 | 68.1 | 64.1 | 72.1 | 50.5 | 47.5 | 53.5 |
| 2* | 118 | 156.3 | 131.1 | 181.5 | 106.6 | 97.1 | 116.1 | 67.6 | 60.9 | 74.2 |
Общее число видов в анализируемых выборках составило 63 (рис. 6), расстояние Жаккара между двумя группами описаний – 0.63. Этот результат показывает, что несмотря на сходные показатели видовой насыщенности и наблюдаемого видового богатства, исследуемые группы сообществ значительно различаются по видовому составу.
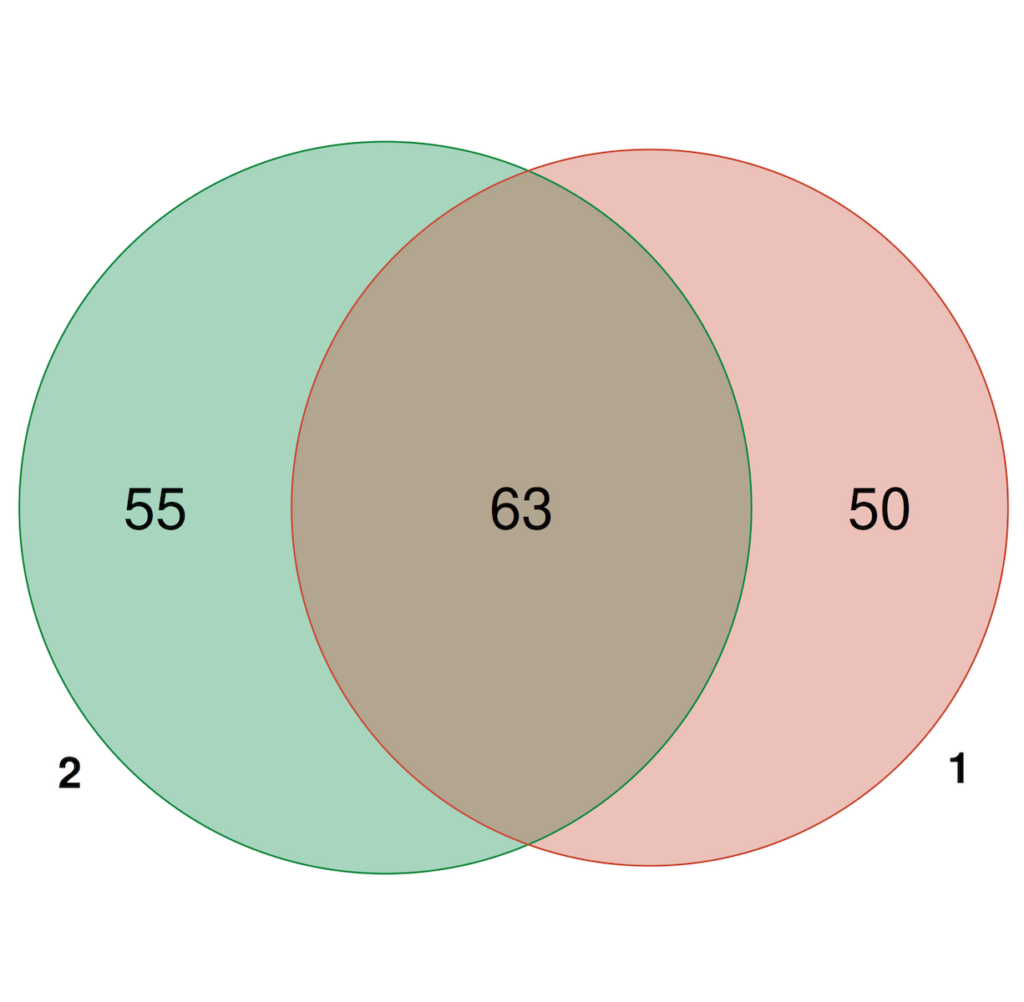
Рисунок 6. Диаграмма Венна для видового богатства лесов, исследованных в долине Кендара (1) и снаружи Каркаралинского горного массива (2)
Результаты анализа структурного разнообразия показали, что в травянистом ярусе исследованных сообществ преобладали лесные (бореальные и неморальные) и лугово-степные виды (рис. 7). В эколого-ценотической структуре лесов долины Кендара более половины составляли неморальные и бореальные виды. В лесах, исследованных снаружи горного массива, участие лесных видов снижалось за счет увеличения доли видов нитрофильной, лугово-степной, боровой и водно-болотной ЭЦГ.
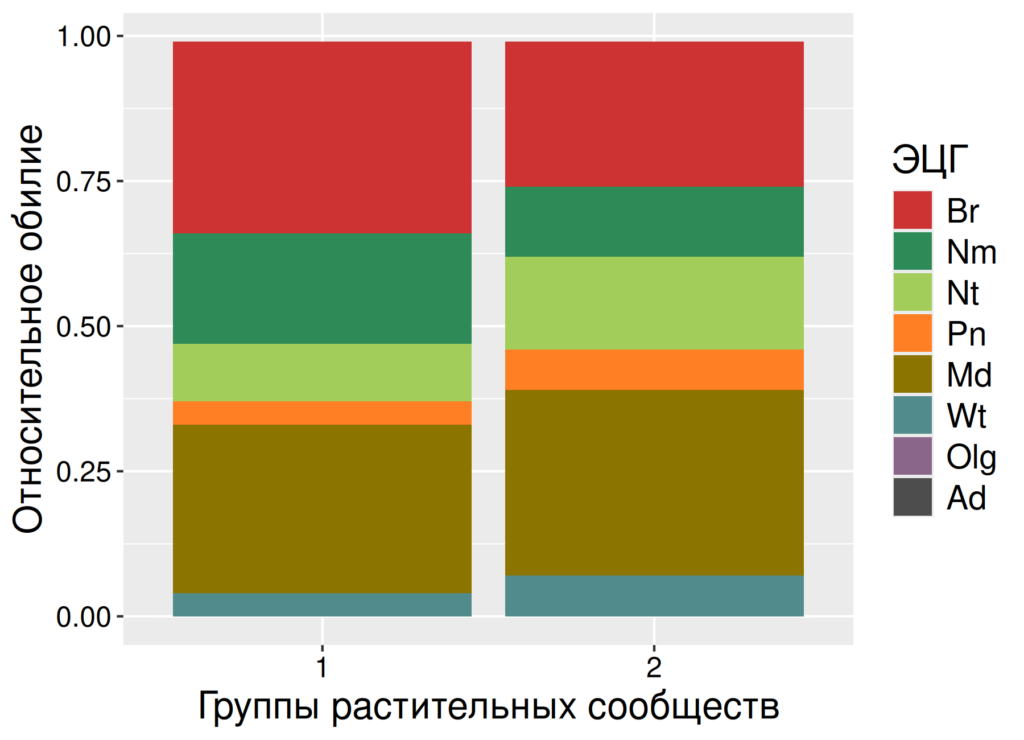
Рисунок 7. Эколого-ценотическая структура травянистого яруса в долине Кендара (1) и в лесах снаружи горного массива (2). Коды ЭЦГ см. в разделе Материалы и методы. Участие олиготрофных и адвентивных видов составляет менее 1%, поэтому они не видны на диаграмме
Полученные сведения об эколого-ценотической структуре хорошо согласуются с результатами расчетов индикаторых значений видов (табл. 2). В лесах долины Кендара виды, имеющие значимые индикаторные значения, относились к четырем ЭЦГ, при этом половину из них составляли лесные (неморальные и бореальные), также были широко представлены виды лугово-степной ЭЦГ. В сообществах снаружи горного массива разнообразие ЭЦГ среди значимых индикаторных видов было выше (6 групп). Наиболее представлены виды лугово-степной ЭЦГ.
Таблица 2. Индикаторные значения видов травянистого яруса в лесах долины Кендара и снаружи горного массива
| Вид | ЭЦГ | Индикаторное значение | P-значение |
| Долина Кендара | |||
| Orthilia secunda | Br | 0.776 | 0.005 |
| Rosa acicularis | Br | 0.679 | 0.030 |
| Melica nutans | Nm | 0.858 | 0.005 |
| Elymus caninus | Nm | 0.759 | 0.005 |
| Pinus sylvestris | Pn | 0.985 | 0.005 |
| Fragaria vesca | Md | 0.869 | 0.005 |
| Ranunculus polyanthemos | Md | 0.853 | 0.005 |
| Dactylis glomerata | Md | 0.628 | 0.020 |
| Леса снаружи Каркаралинского горного массива | |||
| Equisetum pratense | Br | 0.534 | 0.045 |
| Poa nemoralis | Nm | 0.598 | 0.010 |
| Stellaria graminea | Pn | 0.535 | 0.005 |
| Ranunculus polyrhizos | Md | 0.845 | 0.005 |
| Fragaria viridis | Md | 0.463 | 0.030 |
| Galium songaricum | Md | 0.463 | 0.015 |
| Taraxacum leucanthum | Md | 0.463 | 0.045 |
| Eleocharis palustris | Wt | 0.535 | 0.010 |
| Carex disticha | Wt | 0.463 | 0.050 |
| Salix rosmarinifolia | Olg | 0.463 | 0.015 |
Таким образом, полученные результаты показывают, что леса в долине Кендара богаче по показателю видовой насыщенности, при этом гамма-разнообразие выше в лесах, исследованных снаружи Каркаралинского горного массива. В обеих группах лесов отмечено одинаковое разнообразие эколого-ценотических групп при разном количественном соотношении. Преобладание бореальных и неморальных видов в лесах долины Кендара согласуется с литературными данными о длительном существовании лесов на этой территории (Грибанов, 1960; Горчаковский, 1987). Очевидно, что эти сообщества имеют бо́льшую сохранность по сравнению с лесами снаружи горного массива, однако в силу длительной истории природопользования на этой территории сложно оценить, насколько современное состояние сохранившихся сосновых лесов отражает их потенциальное разнообразие.
На разнообразие сообществ снаружи горного массива оказывают влияние как их экотонное положение, так и антропогенный фактор, выражающийся прежде всего в выпасе и рекреационной нагрузке. По всей видимости, именно с этим связано более высокое (по сравнению с относительно изолированными и ограниченными для посещения лесами Кендары) участие видов лугово-степной и нитрофильной ЭЦГ. Очевидно, что проанализированная нами выборка не отражает всего разнообразия этих сообществ, однако полученные в этой работе результаты свидетельствуют о высоком видовом и структурном разнообразии лесов, дальнейшее изучение которого является актуальной задачей.
Важным фактором, влияющим на состав исследованных сообществ в настоящее время, также являются инвазии чужеродных ключевых видов – дождевых червей (Lumbricidae, Oligochaeta) и деревьев. Результаты недавних исследований показали, что в последние десятилетия почвы лесов Центрального Казахстана подвергаются инвазиям чужеродных видов дождевых червей. Наиболее активно внедряется внутрипочвенный вид Aporrectodea caliginosa (Savigny, 1826), формирующий практически монодоминантные сообщества люмбрицид с биомассой, сопоставимой с показателями для средней полосы России (Славченко, Славченко, 1989; Шашков и др., 2024; Shashkov et al., 2025). Из литературы известно, что инвазивные виды дождевых червей могут существенно влиять на состав и структуру сообществ, часто занимая ранее свободные экологические ниши (Mathieu, et al., 2024). Например, для лесов Северной Америки показано, что такие инвазии ведут к радикальным изменениям структуры живого напочвенного покрова (Thouvenot et al., 2024) и сокращению подроста (Alexander et al., 2022). В настоящее время большинство известных местообитаний Aporrectodea caliginosa в горах Каркаралы приурочены к лесам, произрастающим снаружи горного массива (Aporrectodea …, 2026). Вероятно, наличие инвазивных дождевых червей также вносит вклад в выявленные в этой работе различия в видовом и структурном разнообразии анализируемых групп растительных сообществ. В частности, инвазии люмбрицид наряду с выпасом могли способствовать увеличению доли нитрофильных видов снаружи горного массива.
Среди инвазивных видов деревьев наибольшую угрозу для исследованных лесов представляет клен ясенелистный Acer negundo L. Этот вид характеризуется высокими скоростями прироста биомассы и при внедрении в естественные местообитания создает монодоминантные сообщества (Виноградова и др., 2022). Ранее показано, что в ленточных борах Алтая Acer negundo способен образовывать густой подлесок, препятствуя возобновлению сосны, а в некоторых случаях замещая ее (Терехина и др., 2020; Малиновских, 2023). Известно, что клен ясенелистный широко использовался в странах Центральной Азии для городского озеленения с 1970-х гг. благодаря его способности хорошо переносить засуху (Виноградова, 2006). Результаты наших исследований показывают, что в настоящее время происходит расселение Acer negundo из городского озеленения Каркаралинска в леса (Acer …, 2026). Генеративные деревья клена отмечены нами в окрестностях города Каркаралинск: в сосновом лесу при въезде в урочище Шайтанколь, а также на базе проведения полевых практик Карагандинского университета в пойме реки Тулькили. В долине Кендара зафиксированы две встречи Acer negundo: деревья прегенеративного состояния обнаружены на опушке смешанного осиново-березового леса и сосняка. Очевидно, что на текущем этапе инвазия клена ясенелистного еще не имеет значительного влияния на состав и структуру сообществ Каркаралинских лесов. Тем не менее, с учетом потенциальной опасности этого вида, необходимы дальнейшие исследования по мониторингу состояния популяций Acer negundo в уже известных местах произрастания и выявлению новых мест его распространения в районе исследований.
ЗАКЛЮЧЕНИЕ
В данной работе впервые дана сравнительная количественная оценка биоразнообразия долинных лесов Каркаралинского горного массива. Показано, что леса в ограниченной для посещения межгорной долине Кендара характеризуются несколько бо́льшими показателями видовой насыщенности, но их видовое богатство ниже по сравнению с лесами, расположенными снаружи горного массива, для которых характерны экотонное положение, сильное влияние выпаса и высокая рекреационная нагрузка. Обе группы лесов не различались по разнообразию эколого-ценотических групп, однако в лесах долины Кендара обилие лесных (бореальных и неморальных) видов было значительно выше, что свидетельствует о длительном существовании лесов на этой территории.
Полученные результаты демонстрируют необходимость дальнейших исследований современного состояния биоразнообразия лесов Казахского мелкосопочника. Актуальной задачей является изучение инвазий чужеродных ключевых видов.
БЛАГОДАРНОСТИ
Сбор полевого материала выполнен при финансовой поддержке Министерства науки и высшего образования Республики Казахстан, грантовый проект AP26199585. Количественный анализ данных проведен Ивановой Н. В. в рамках бюджетной темы №FFMN-2025-0024. Авторы благодарят инженера научно-исследовательского парка биотехнологий и экомониторинга КарНИУ Анастасию Александровну Федорову за помощь в проведении полевых исследований.
СПИСОК ЛИТЕРАТУРЫ
Ауельбекова А. К., Шорин С. С., Кыздарова Д. К., Мусина Р. Т., Есенгалиева А. Д. Формирование подроста и древостоя на местах горельников в Каркаралинском горнолесном массиве // Всероссийская научно-практическая конференция с международным участием «Эколого-географические проблемы регионов России». Самара, 15 января 2017 г. Самара, Самарский государственный социально-педагогический университет, 2017. С. 90–93.
Виноградова Ю. К. Формирование вторичного ареала и изменчивость инвазионных популяций клена ясенелистного (Acer negundo L.) // Бюллетень Главного Ботанического сада. 2006. Вып. 190. С. 25–48.
Виноградова Ю. К., Майоров С. Р., Костина М. В. Клен ясенелистный (Acer negundo L.): морфология, биология и оценка инвазивности. Москва: Товарищество научных изданий КМК, 2022. 218 с.
Гвоздецкий Н. А., Михайлов Н. И. Физическая география СССР. Азиатская часть: учеб. для студ. геогр. спец. ВУЗов. Изд. 4-е. Москва: Высшая Школа, 1987. 448 с.
Горчаковский П. Л. Лесные оазисы Казахского мелкосопочника. Москва: Наука, 1987. 157 с.
Грибанов Н. Г. Степные боры Алтайского края Казахстана. Москва-Ленинград: Гослесбумиздат, 1960. 155 с.
Данчева А. В., Залесов С. В. Районирование сосновых лесов Республики Казахстан // Леса России и хозяйство в них. 2024. №1 (88). С. 4–28. DOI: 10.51318/FRET.2023.88.1.001
Дикарева Т. В., Леонова Н. Б. Фиторазнообразие сопок Каркаралинского национального парка (Республика Казахстан) // Аридные экосистемы. 2014. Т. 20. № 4(61). С. 105–114.
Ишмуратова М. Ю., Мырзалы Г. Ж., Ивлев В. И., Матвеев А. Н. Флора Улытау (Центральный Казахстан). Караганда: Болашак-Баспа, 2016. 127 с.
Ишмуратова М. Ю., Тлеукенова С. А., Гаврилькова Е. А., Тыржанова С. С., Шашков М. П., … & Хапилина О. Н. Сосудистые растения Карагандинской области (конспект, анализ и ДНК-баркодирование флоры). Астана: «Центр Элит», 2024. 592 с.
Козина В. В. К истории демографического развития Карагандинской области // Вестник Карагандинского университета. Серия: история, философия, право. 2006. № 3(43). С. 81–92.
Куприянов А. Н. Конспект флоры Казахского мелкосопочника. Новосибирск: Академическое изд-во «Гео», 2020. 423 с. DOI: 10.21782/B978-5-6043021-8-7
Максутова П. А., Дюсекеева Ш. Е., Кулмаганбетова А. О. Физическая география Карагандинской области. Караганда: изд-во КарГУ, 2005. 59 с.
Малиновских А. А. Влияние клена ясенелистного (Acer negundo L.) на естественное возобновление сосны обыкновенной в Барнаульском ленточном бору // Лесной вестник. Forestry Bulletin. 2023. Т. 27. № 3. С. 48–56. DOI: 10.18698/2542-1468-2023-3-48-56
Погода и климат. Архив погоды в Каркаралинске. 2026. URL: https://clck.su/pxRMg (дата обращения: 01.04.2026).
Попов Ю. Г. Хранители Каркаралинского бора (судьба Якова Бернацкого) // Ботанические исследования Сибири и Казахстана. 2008. Вып. 14. С. 100–111.
Попов Ю. Г., Рязанцев В. П. Корниловы, Карбышевы, Рязанцевы и другие казаки станицы Каркаралинской. Штрихи краеведческой летописи. Изд. 3-е. Новосибирск: Арта, 2012. 142 с.
Рачковская Е. И. Опустыненные полынно-дерновиннозлаковые степи Центрального Казахстана // Растительность России. 2016. Вып. 28. С. 108–124. DOI: 10.31111/vegrus/2016.28.108
Славченко В. С., Славченко Н. П. Анализ фауны дождевых червей (Lumbricidae, Oligochaeta) Каркаралинского природного парка (Казахское нагорье) // Влияние генотипа и комплекса экологических факторов на жизнедеятельность организмов. Сборник научных трудов. Караганда: Карагандинский государственный университет, 1989. С. 107–112.
Смирнов В. Э., Ханина Л. Г., Боборовский М. В. Оценка видового разнообразия растительности на основе интегрального статистического подхода в условиях неоднородных данных (на примере заповедника «Калужские засеки») // Вестник Томского государственного университета. Биология. 2014. № 4(28). С. 70–87. DOI: 10.17223/19988591/28/5
Смирнов В. Э., Ханина Л. Г., Бобровский М. В. Обоснование системы эколого-ценотических групп видов растений лесной зоны Европейской России на основе экологических шкал, геоботанических описаний и статистического анализа // Бюллетень МОИП. Серия биологическая. 2006. Т. 111. № 2. С. 36–47.
Смирнов В. Э., Ханина Л. Г., Бобровский М. В. Расширенная система эколого-ценотических групп видов сосудистых растений для бореальной, гемибореальной и умеренной лесных зон Европейской России. 2008. URL: https://golnk.ru/5KDQK дата обращения: 01.04.2026).
Терехина Т. А., Овчарова Н. В., Елесова Н. В. Биологическая и структурная оценка популяций клена ясенелистного (Acer negundo L.) в Барнаульском ленточном бору // Проблемы ботаники Южной Сибири и Монголии. 2020. Т. 19. № 2. С. 374–379.
Ханина Л. Г., Смирнов В. Э., Бобровский М. В. Оценка видового разнообразия растительных сообществ заповедника «Калужские засеки» на основе индексов Шеннона, Симпсона и чисел Хилла // Лесоведение. 2016. № 1. С. 65–73.
Шашков М. П., Иванова Н. В., Абукенова В. С., Ишмуратова М. Ю. Оценка факторов, лимитирующих распространение дождевых червей в лесных сообществах Центрального Казахстана, по геоботаническим данным // Всероссийская научная конференция с международным участием «80 лет экологической науке на Урале». Екатеринбург, 11–15 ноября 2024 г. Екатеринбург, Реэкшен, 2024. С. 255–257.
Acer negundo occurrences from Karkaraly mountains. GBIF Occurrence Download. 2026. https://doi.org/10.15468/dl.6qfgag accessed via GBIF.org (01 April 2026).
Alexander G., Almendinger J., White P. The long-term effects of invasive earthworms on plant community composition and diversity in a hardwood forest in northern Minnesota // Plant-Environment Interactions. 2022. Vol. 3. P. 89–102. DOI: 10.1002/pei3.10075
Aporrectodea caliginosa occurrences from Karkaraly mountains. GBIF Occurrence Download. 2026. https://doi.org/10.15468/dl.9tqfs4 accessed via GBIF.org (01 April 2026).
Chao A., Gotelli N. J., Hsieh T. C., Sander E. L., Ma K. H., Colwell R. K., Ellison A. M. Rarefaction and extrapolation with Hill numbers: a framework for sampling and estimation in species diversity studies // Ecological Monographs. 2014. Vol. 84. P. 45–67. DOI: 10.1890/13-0133.1
R Core Team. A Language and Environment for Statistical Computing. R Foundation for Statistical Computing, Vienna, Austria. 2025. https://www.R-project.org/ (01 April 2026).
De Cáceres M., Legendre P. Associations between species and groups of sites: indices and statistical inference // Ecology. 2009. Vol. 90. I. 12. P. 3566–3574. DOI: 10.1890/08-1823.1
Hsieh T. C., Ma K. H., Chao A. iNEXT: an R package for rarefaction and extrapolation of species diversity (Hill numbers) // Methods in Ecology and Evolution. 2016. Vol. 7. P. 1451–1456. DOI: 10.1111/2041-210X.12613
Ishmuratova M. Yu., Ivanova N. V. First Vegetation Plot Data from Forest Islands of Central Kazakhstan. Sampling event dataset // Karaganda Buketov University. 2024. https://doi.org/10.15468/wwtfde accessed via GBIF.org (01 April 2026).
Ivanova N. V., Ishmuratova M. Yu., Shashkov M. P., Fedorova A. A. Vegetation data from Kendara Valley (Karkaraly National Park, Kazakhstan). Sampling event dataset // Karaganda Buketov University. 2026. https://doi.org/10.15468/ju7pnw accessed via GBIF.org (01 April 2026).
Ivanova N., Shashkov M. Species and functional diversity of forest communities with wild fruits plants in Central Kazakhstan // Fundamental and Experimental Biology. 2025. Vol. 11930. № 3. P. 159–167.
Thouvenot L., Ferlian O., Craven D., Johnson E. A., … & Eisenhauer N. Invasive earthworms can change understory plant community traits and reduce plant functional diversity // iScience. 2024. Vol. 27. No. 3. Article ID: 109036. DOI: 10.1016/j.isci.2024.109036
Manly B. F. J. Randomization, bootstrap and Monte Carlo methods in biology. 3rd Edition. New York: Chapman & Hall CRC, 2007. 480 p. DOI: 10.1201/9781315273075
Mathieu J., Reynolds J. W., Fragoso C., Hadly E. Multiple invasion routes have led to the pervasive introduction of earthworms in North America // Nature Ecology & Evolution. 2024. Vol. 8. P. 489–499. DOI: 10.1038/s41559-023-02310-7
Oksanen J., Simpson G., Blanchet F. Vegan: Community Ecology Package. R package version 2.6-8. 2024. URL: https://CRAN.R-project.org/package=vegan (01 April 2026).
Rossi J.-P. rich: An R Package to Analyse Species Richness // Diversity. 2011. Vol. 3(1). P. 112–120. DOI: 10.3390/d3010112
Shashkov M. P., Ivanova N. V., Abukenova V. S. Earthworm (Lumbricidae) field occurrences from Central Kazakhstan. Occurrence dataset // Karaganda Buketov University. 2025. https://doi.org/10.15468/d4k8cg accessed via GBIF.org (01 April 2026).
Рецензент: д. б. н., доцент Третьякова А. С.