- DOI: 10.31509/2658-607x-202693-198
- УДК 630*421
Состав и структура растительных сообществ «ядра» заповедника «Кологривский лес» до массового ветровала 2021 года

© 2026 Н. В. Иванова
1ИМПБ РАН — филиал ИПМ им. М. В. Келдыша РАН,
Россия, 142290 Московская обл., г. Пущино, ул. проф. Виткевича, д. 1
Поступила в редакцию: 12.08.2026
После рецензирования: 07.09.2026
Принята к печати: 15.09.2026
.
Изучение биоразнообразия малонарушенных лесов является актуальной задачей лесной экологии. Целью данной работы стала количественная оценка разнообразия живого напочвенного покрова в старовозрастных южно-таежных лесах заповедника «Кологривский лес» (Костромская область). Геоботанические описания собраны в 2012 и 2013 годах на пробных площадях 100 м2 с указанием обилия видов по шкале Браун-Бланке. Всего проанализировано 52 описания. Классификацию выполняли при помощи кластерного анализа. Затем для каждой группы описаний рассчитывали показатели видового и структурного разнообразия. Для оценки альфа-разнообразия рассчитывали видовую насыщенность и индекс Шеннона, различия между группами выявляли при помощи рандомизационных тестов. Бета-разнообразие оценивали на основе расстояния Жаккара. Для анализа гамма-разнообразия рассчитывали числа Хилла и строили кумулятивные кривые разнообразия. Для каждой группы вычисляли индикаторные значения видов. Структурное разнообразие оценивали на основе разнообразия эколого-ценотических групп (ЭЦГ).
В результате анализа выделено 3 группы сообществ: (1) несомкнутые липняки с подростом клена и липы, подлеском из рябины, неморальные, (2) елово-липовые древостои с подростом клена, ели и липы, подлеском из рябины, неморально-бореальные, (3) разреженные ельники с участием липы, подростом ели и подлеском из рябины, бореальные. Выделенные группы сообществ сходны по показателям альфа-, бета- и гамма разнообразия, но различаются по эколого-ценотической структуре живого напочвенного покрова, составу и обилию древесного яруса, подроста и подлеска. Сравнение с данными мониторинга на постоянных пробных площадях показало, что полученные результаты подтверждают выводы о естественном распаде старовозрастных ельников до катастрофического ветровала 2021 года и увеличении доли липы в древостоях. Полученные в данной работе результаты ставят под сомнение сделанный ранее вывод о бореализации живого напочвенного покрова в Кологривском лесу.
Ключевые слова: малонарушенные леса, Костромская область, биоразнообразие, числа Хилла, эколого-ценотические группы
Государственный природный заповедник «Кологривский лес» имени М. Г. Синицына создан в Костромской области в 2006 году для сохранения уникального участка южной тайги – массива разновозрастных субнеморальных елово-пихтовых лесов с участием широколиственных видов деревьев («ядро» заповедника). На момент заповедания территории площадь старовозрастного массива составляла около 700 га (1.2 % от всей площади ООПТ).
Первые исследования древостоев «ядра» заповедника (тогда памятника природы «Кологривский лес») были проведены в 1970-х — 80-х годах. В основных типах леса заложено более 30 постоянных пробных площадей и дано их лесоводственное описание (Дылис, Прокуронов, 1986; Письмеров и др., 1986; Абатуров, 1988). Было выяснено, что древостои имеют разновозрастную и многоярусную структуру. Верхний ярус образован елью европейской (Picea abies (L.) H. Karst.) и липой мелколистной (Tilia cordata Mill.) при участии пихты сибирской (Abies sibirica Ledeb) и березы пушистой (Betula pubescens Ehrh.). Во втором и третьем подъярусах древостоя помимо этих видов участвуют ильм (Ulmus glabra Huds.), клен остролистный (Acer platanoides L.), рябина обыкновенная (Sorbus aucuparia L.) и ива козья (Salix caprea L.). Возраст наиболее старых деревьев ели составляет 260 лет. Расположение деревьев неравномерное, хорошо выражена мозаика окон возобновления, присутствует валеж разных стадий разложения. Дальнейшие мониторинговые исследования, продолженные на 11-ти из первоначально заложенных постоянных пробных площадей (Лебедев, Чистяков, 2021), выявили, что к 2010-м годам произошло снижение продукционных показателей для ели и их увеличение для липы. Было установлено, что в результате естественного выпадения старых деревьев ели в пологе леса образуются окна, площадь которых достигает 500 м2. В мае 2021 года в заповеднике произошел массовый ветровал, вызванный шквальным ветром, которым было повреждено 40.5% от общей площади «ядра» (Иванова и др., 2024). Изучение состояния древостоев после этого катастрофического природного явления является предметом современных исследований Кологривского леса (Лебедев и др., 2025; Ivanova, Shashkov, 2022).
Состав и структура живого напочвенного покрова в лесах «ядра» заповедника до сих пор остаются малоизученными. При организации постоянных пробных площадей было описано в том числе и видовое разнообразие сосудистых растений (Дылис, Прокуронов, 1986; Абатуров, 1988); на некоторых площадях в 2018–2020 годах проведена его повторная инвентаризация (Дубенок и др., 2024; Lebedev et al., 2023). Оценки видового и структурного разнообразия сообществ «ядра» заповедника вне постоянных пробных площадей единичны (Грозовская и др., 2015; Луговая, 2010; Немчинова, 2005; Хорошев и др., 2013). В то же время такие данные необходимы для более полного описания мозаики разновозрастных парцелл Кологривского леса и изучения сукцессионных процессов в малонарушенных южнотаежных лесах. Поэтому целью исследования стала количественная оценка видового и структурного разнообразия лесов «ядра» заповедника на основе объединённого массива геоботанических описаний.
МАТЕРИАЛЫ И МЕТОДЫ ИССЛЕДОВАНИЙ
Материалом для данной работы стали описания лесных сообществ, собранные в «ядре» заповедника в 2012 и 2013 годах в ходе изучения факторов, лимитирующих распространение охраняемого лишайника лобарии легочной (Lobaria pulmonaria (L.) Hoffm.) (Ivanova, 2015), и оценки биомассы живого напочвенного покрова в еловых лесах Костромской области (Грозовская и др., 2015). Описания доступны через репозиторий GBIF (Ivanova et al., 2018). Исследования проводили на площадках 10×10 м с указанием общего проективного покрытия в основных ярусах растительности (А – древесного, В – подроста и подлеска, С – травяно-кустарничкового, D – мохово-лишайникового) и обилия видов в каждом ярусе по шкале Браун-Бланке. Всего выполнено 52 описания.
Анализ данных выполняли в среде R (R Core…, 2025), с использованием для визуализации функций пакетов ggplot2 и factoextra. Сначала геоботанические описания классифицировали по составу и обилию травяно-кустарничкового яруса и оценивали показатели видового и структурного разнообразия для каждой группы. Для выделения групп растительности проводили кластерный анализ методом Варда с использованием меры расстояния Гелленджера (функции vegdist() и hclust()) и неметрическое многомерное шкалирование по алгоритму, реализованному в функции metaMDS() пакета vegan (Oksanen et al., 2024). Затем для каждой группы рассчитывали показатели альфа- (видовая насыщенность, индекс Шеннона) и бета-разнообразия (коэффициент флористического сходства Жаккара, функция vegdist()). Значимость различий в видовой насыщенности оценивали при помощи рандомизационных тестов (Manly, 2006) с коррекцией p-значений на множественность сравнений. Использовали функцию c2m() пакета rich (Rossi, 2011). Индикаторные значения видов в группах рассчитывали по методу, реализованному в функции multipatt() пакета Indicspecies (De Cáceres, Legendre, 2009). Для анализа гамма-разнообразия при помощи функций пакета iNEXT (Hsieh et al., 2016) рассчитывали числа Хилла: видовое богатство (q = 0), эффективное число видов для индекса Шеннона (q = 1) и эффективное число видов для индекса Симпсона (q = 2), на основе которых строили кумулятивные кривые разнообразия с 95%-м доверительными интервалами для 27 описаний (утроенный объем наименьшей по числу описаний группы). Структурное разнообразие в выделенных группах растительности оценивали на основе разнообразия эколого-ценотических групп (ЭЦГ). Использовали ЭЦГ, описанные в работах (Смирнов и др., 2006, 2008). Расчеты проводили с учетом обилия видов. Для каждой группы лесных сообществ на основе геоботанических описаний давали характеристику состава и обилия А и В ярусов.
РЕЗУЛЬТАТЫ И ОБСУЖДЕНИЕ
Всего в анализируемом массиве данных в травяно-кустарничковом ярусе учтено 64 вида сосудистых растений. По результатам кластерного анализа выделено 3 группы описаний (рис. 1А), которые частично перекрываются на ординационной диаграмме (рис. 1Б). В первую группу вошли 9 описаний, во вторую – 22, в третью – 21.
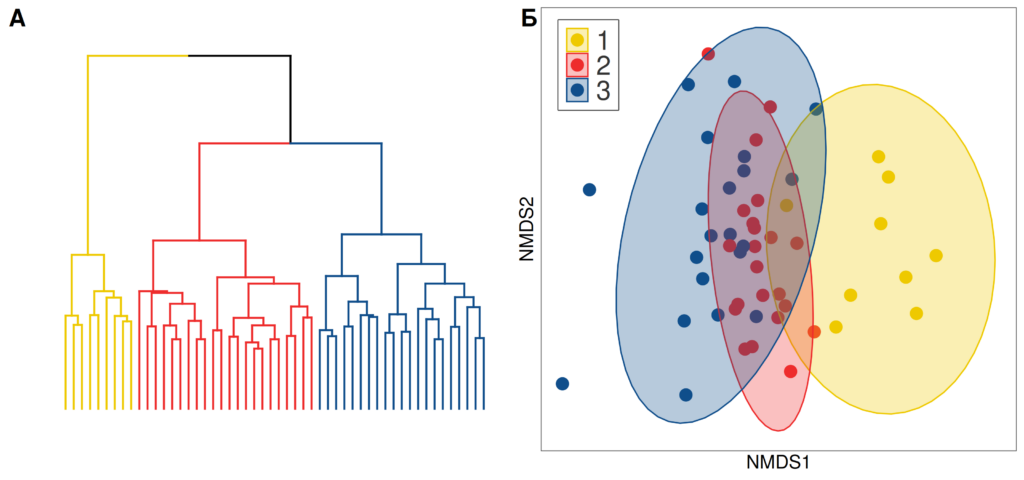
Рисунок 1. Результаты кластерного анализа описаний травяно-кустарничкового яруса в исследованных лесах «ядра» заповедника. А – дендрограмма по результатам кластерного анализа, Б – ординационная диаграмма.
По показателям альфа-разнообразия (рис. 2) выделенные группы значимо не различались (P>0.005). Статистически значимых индикаторных видов для выделенных групп также не выявлено. В травяно-кустарничковом ярусе во всех группах доминировал папоротник Dryopteris expansa (C.Presl) Fraser-Jenk. & Jermy, обилие которого составляло от 3 до 5 баллов по шкале Браун-Бланке. Помимо него в сообществах первой группы высокое обилие имели Galium odoratum (L.) Scop., Pulmonaria obscura Dumort., Oxalis acetosella L. и Stellaria nemorum L. Во второй группе с высоким обилием встречалась Oxalis acetosella. В третьей группе – Galium odoratum, Stellaria holostea L., Oxalis acetosella и Vaccinium myrtillus L. Различия между группами по коэффициенту флористического сходства Жаккара были невелики (табл.).
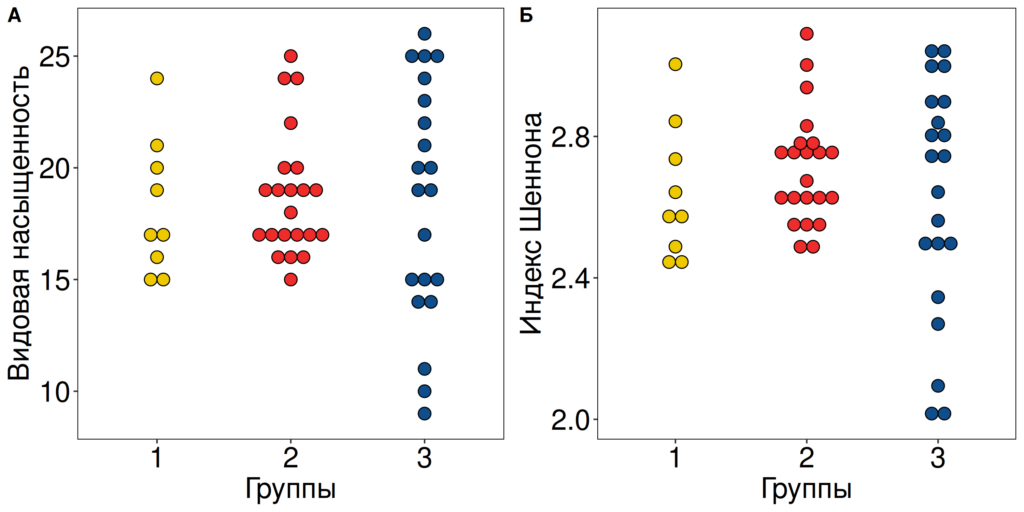
Рисунок 2. Показатели альфа-разнообразия травяно-кустарничкового яруса в выделенных группах геоботанических описаний. А — видовая насыщенность, Б — индекс Шеннона.
Таблица. Коэффициенты флористического сходства Жаккара для сосудистых растений травяно-кустарничкового яруса в выделенных группах описаний лесов «ядра» заповедника
| Группа 1 | Группа 2 | |
| Группа 2 | 0.71 | |
| Группа 3 | 0.69 | 0.70 |
Согласно литературным данным (Дубенок и др., 2024), в 2018–2020 гг. на постоянных пробных площадях в «ядре» заповедника учтено от 15 до 31 вида сосудистых растений. Эти оценки были получены выборочно-статистическим методом, который предполагает учет видов на площадках 1 м2, число закладываемых площадок составляет не менее 10-ти и зависит от размера постоянной пробной площади. Поскольку инвентаризация видового разнообразия в нашей работе проведена на площадках 100 м2, сопоставление полученных результатов с данными по постоянным пробным площадям, по всей видимости, невозможно.
Результаты анализа гамма-разнообразия показали сходные показатели наблюдаемого видового богатства в трех анализируемых группах (рис. 3). Статистически значимых различий смоделированных оценок видового богатства не выявлено.
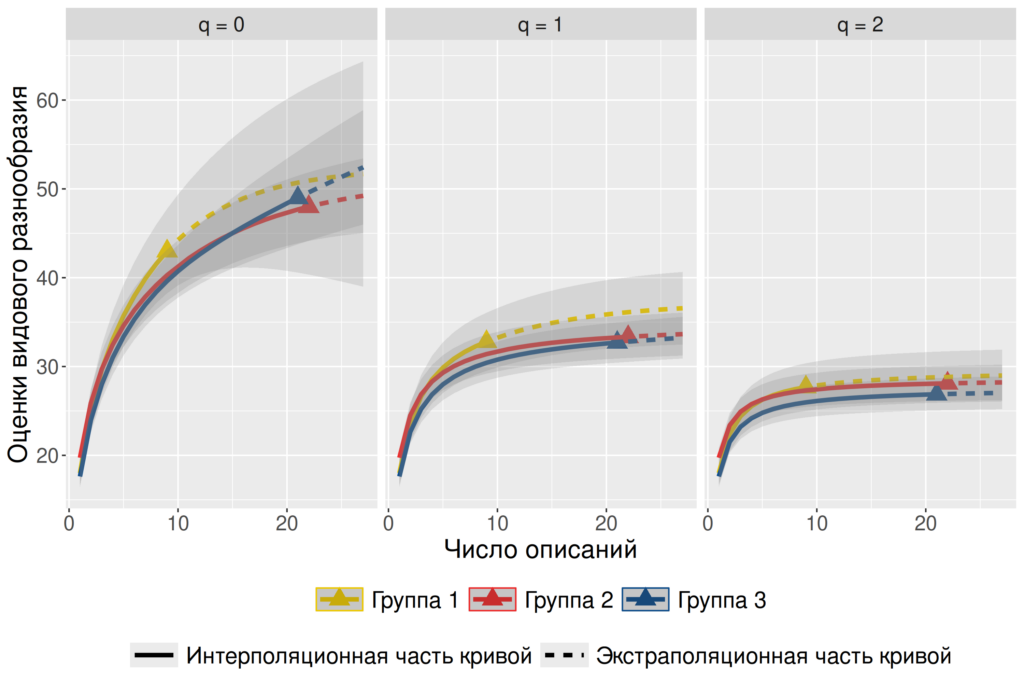
Рисунок 3. Кумулятивные кривые разнообразия с 95%-ми доверительными интервалами для исследуемых групп описаний лесов «ядра» заповедника. Числа Хилла: q = 0 — видовое богатство, q = 1 — эффективное число видов для индекса Шеннона, q = 2 — эффективное число видов для индекса Симпсона.
Отсутствие значимых различий по показателям альфа-, бета- и гамма разнообразия между выделенными группами в целом ожидаемый результат, поскольку все исследованные сообщества представляют собой старовозрастные леса, а площадь «ядра» заповедника относительно невелика.
Результаты анализа эколого-ценотической структуры травяно-кустарничкового яруса показали, что выделенные группы растительных сообществ различались по соотношению неморальных и бореальных видов (рис. 4). В группе 1 преобладали виды неморальной ЭЦГ (43.6%), участие бореальных видов было минимальным среди трех групп (16.2%). В группе 2 участие бореальных видов возрастало до 47.4%, неморальных, напротив, снижалось до 25.9%. Наибольшее участие бореальных видов отмечено в группе 3 (57.8%) при минимуме неморальных (14.8%). Участие видов высокотравной и нитрофильной ЭЦГ было невелико и снижалось по мере увеличения доли бореальных видов. Участие видов крупнопапоротниковой ЭЦГ было относительно постоянным во всех группах и составило 16.9–18.9%.
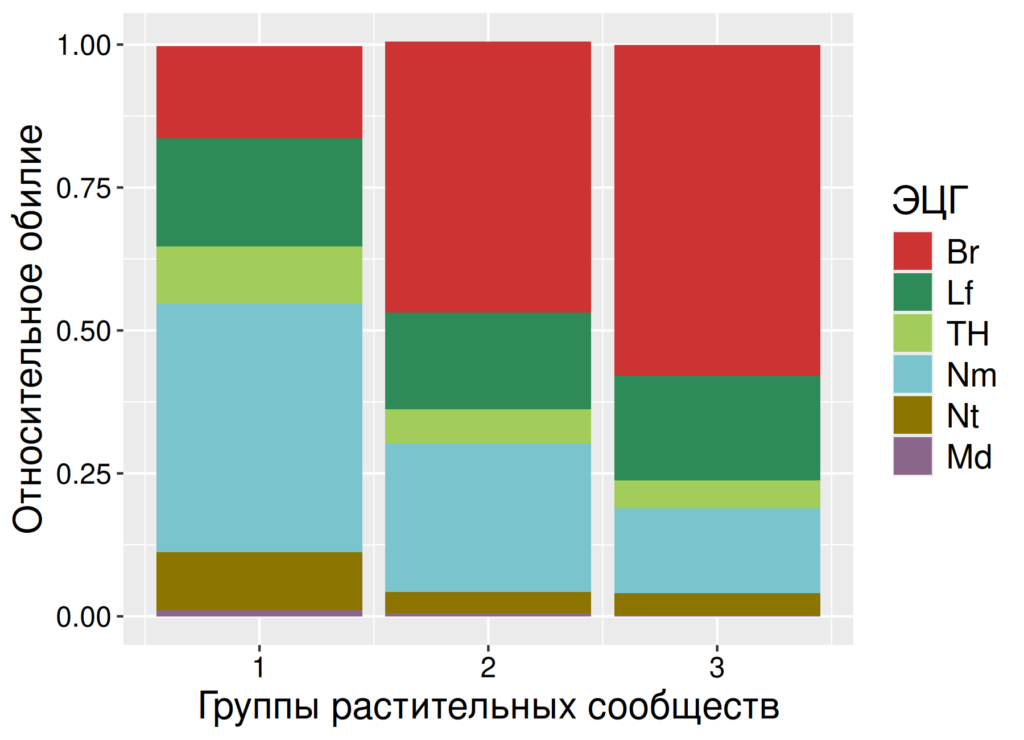
Рисунок 4. Эколого-ценотическая структура травяно-кустарничкового яруса в выделенных группах растительности. ЭЦГ: Br – бореальная, Lf – крупнопапоротниковая, TH – высокотравная, Nm – неморальная, Nt – нитрофильная, Md – лугово-опушечная.
По данным мониторинга на постоянных пробных площадях за 40-летний период в структуре живого напочвенного покрова «ядра» заповедника произошло повсеместное увеличение доли бореальных видов и сокращение неморальных (Дубенок и др., 2024). В наших данных высокое участие бореальных видов выявлено только в одной из трех выделенных групп сообществ. Такое несоответствие может быть связано с тем, что анализируемые нами описания охватывают большее разнообразие сообществ по сравнению с постоянными пробными площадями. Из-за распада древостоев на некоторых постоянных пробных площадях их размер при повторных обследованиях был сокращен (Лебедев, Чистяков, 2021). Поэтому опубликованные (Дубенок и др., 2024) данные об эколого-ценотической структуре, по всей видимости, относятся только к сомкнутым древостоям, и вывод о бореализации живого напочвенного покрова нельзя распространять на все леса «ядра» заповедника.
Анализ видового состава и обилия деревьев по материалам геоботанических описаний показал, что выделенные группы сообществ различались по проективному покрытию и разнообразию А и В ярусов (рис. 5). Для лесов группы 1 отмечено минимальное среднее проективное покрытие яруса А (33.3%) при максимальном среднем проективном покрытии яруса В (70.0%). В древесном ярусе этой группы сообществ преобладала липа, в подросте доминировал клен. В группе 2 средние проективные покрытия ярусов А и В были практически одинаковы и составили 50 и 51% соответственно. Здесь в составе древостоев помимо липы участвовала ель. В подросте также преобладала ель в содоминировании с кленом, рябиной и липой. В третьей группе сообществ среднее проективное покрытие яруса А составило 39.8%, яруса В – 46.4%. Ярус А состоял из ели, в подросте доминировали ель и рябина.
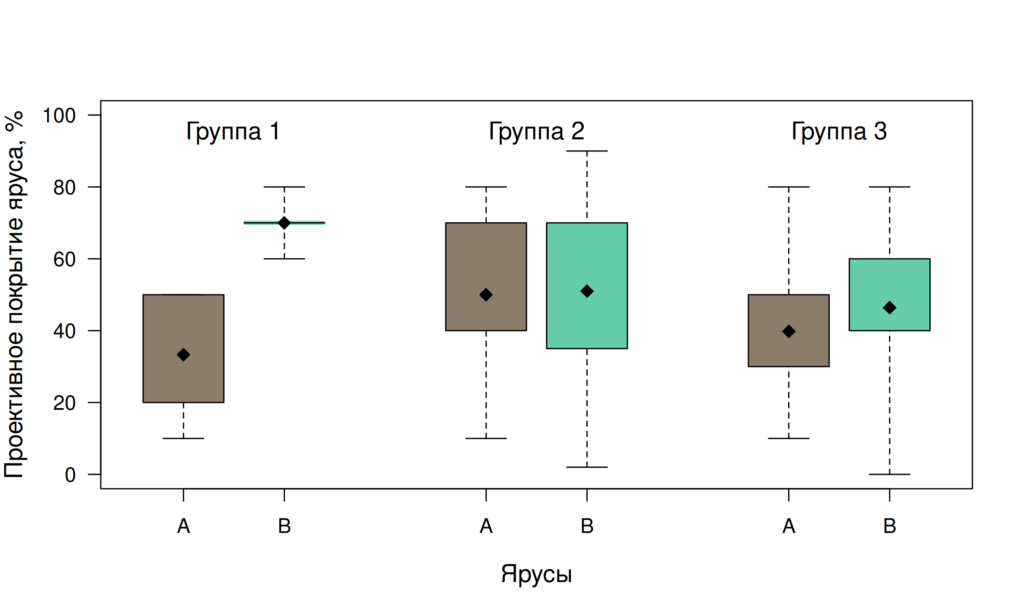
Рисунок 5. Проективно покрытие древесного яруса (А) и яруса подроста и подлеска (В) в выделенных группах растительности. На диаграмме «усы» показывают максимальное и минимальное значение, точки внутри прямоугольников – средние
Таким образом, в результате анализа геоботанических описаний лесов «ядра» заповедника выделены три группы сообществ.
- Несомкнутые липняки с подростом клена и липы, подлеском из рябины, неморальные.
- Елово-липовые леса с подростом клена, ели и липы, подлеском из рябины, неморально-бореальные.
- Разреженные ельники с участием липы, плотным подростом ели и подлеском из рябины, бореальные.
Относительно невысокие значения проективного покрытия древесного яруса во всех группах сообществ согласуются с данными о естественном распаде древостоев Кологривского леса, полученными по результатам мониторинга на постоянных пробных площадях (Иванов и др., 2012; Лебедев, Чистяков, 2021). Высокие баллы обилия липы в древесном ярусе подтверждают полученные для постоянных пробных площадей данные об увеличении доли ее участия в древостоях «ядра» заповедника (Лебедев, Чистяков, 2021).
Очевидно, что описанные в этой работе группы сообществ не охватывают всего разнообразия разновозрастных парцелл Кологривского леса, существовавших до массового ветровала 2021 года. Тем не менее, вместе с результатами мониторинга на постоянных пробных площадях, они подтверждают, что лесной покров «ядра» заповедника представлял собой мозаику окон возобновления и ветровально-почвенных комплексов. Актуальной задачей для получения более детальных данных о разнообразии этой мозаики является обобщение разрозненных материалов, собранных в ходе исследований Кологривского леса, в том числе хранящихся в научном архиве заповедника.
ЗАКЛЮЧЕНИЕ
Впервые проведен количественный анализ биоразнообразия старовозрастных южнотаежных ельников «ядра» заповедника «Кологривский лес». На основе анализа объединенного массива геоботанических описаний выделено три группы лесных сообществ, сходных по показателям альфа-, бета- и гамма разнообразия, но различающихся по эколого-ценотической структуре живого напочвенного покрова, составу и обилию древесного яруса, подроста и подлеска.
Результаты исследования расширяют имеющиеся сведения о составе и структуре старовозрастных ельников, полученные по данным мониторинга на постоянных пробных площадях, и уточняют опубликованные ранее материалы об эколого-ценотической структуре живого напочвенного покрова в лесах «ядра» заповедника до массового ветровала 2021 года.
СПИСОК ЛИТЕРАТУРЫ
Абатуров Ю. Д. Коренные темнохвойные леса южной тайги: резерват «Кологривский лес». М.: Наука, 1988. 218 с.
Грозовская И. С., Ханина Л. Г., Смирнов В. Э., Бобровский М. В., Романов М. С., Глухова Е. М. Биомасса напочвенного покрова в еловых лесах Костромской области // Лесоведение. 2015. №1. С. 63–76.
Дубенок Н. Н., Лебедев А. В., Чистяков С. А., Криницын И. Г., Гемонов А. В. Динамика видового состава лесных фитоценозов за 40-летний период в заповеднике «Кологривский лес» // Вестник Бурятской государственной сельскохозяйственной академии имени В.Р. Филиппова. 2024. №1(74). С. 59–70. DOI: 10.34655/bgsha. 2024.74.1.008
Дылис Н. В., Прокуронов И. Б. О структуре коренного типа елового леса южной тайги // Кологривский лес (экологические исследования). М.: Наука, 1986. С. 6–22.
Иванов А. Н., Буторина Е. А., Балдина Е. А. Многолетняя динамика коренных южнотаежных ельников в заповеднике Кологривский лес // Вестник Московского гос. ун-та. Серия 5: География. 2012. №3. С. 74–49.
Иванова Н. В., Шашков М. П., Лебедев А. В., Шанин В. Н. Количественный анализ факторов, влияющих на повреждение старовозрастного южнотаежного древостоя в результате катастрофического ветровала, на основе дистанционных и объединенных данных // Экология. 2024. № 4. С. 288–296. DOI: 10.31857/S0367059724040043
Лебедев А. В., Иванова Н. В., Гостева Д. Ю., Гостев В. В., Криницын И. Г., Шашков М. П. Породный состав, структура и запасы углерода валежа лесов заповедника «Кологривский лес» после катастрофического ветровала 2021 года // Вопросы лесной науки. 2025. № 1. DOI: 10.31509/2658-607x-202581-160
Лебедев А. В., Чистяков С. А. Долговременные наблюдения на пробных площадях в древостоях ядра заповедника «Кологривский лес» // Вклад особо охраняемых природных территорий в экологическую устойчивость регионов: Современное состояние и перспективы. материалы II Всероссийской конференции, приуроченной к 15-летию создания заповедника «Кологривский лес». Кологрив, Государственный природный заповедник «Кологривский лес», 2021. С. 31–43.
Луговая Д. Л. Влияние экотопических факторов и природопользования на разнообразие лесных сообществ севера Костромской области // Экология. 2010. № 1. С. 9–16.
Немчинова А. В. Дифференциация лесных фитохор бассейна р. Понга на примере ландшафтов «Кологривского леса». Автореферат диссертации на соискание ученой степени кандидата биологических наук по специальности 03.00.05 Ботаника. Сыктывкар, 2005. 23 с.
Письмеров А. В., Письмерова Р. С., Воробей П. М., Тяк А. В. Лесоводственные особенности древостоев основных групп типов леса // Кологривский лес (экологические исследования). М.: Наука, 1986. С. 22–33.
Смирнов В. Э., Ханина Л. Г., Бобровский М. В. Обоснование системы эколого-ценотических групп видов растений лесной зоны Европейской России на основе экологических шкал, геоботанических описаний и статистического анализа // Бюллетень МОИП. Серия биологическая. 2006. Т. 111. № 2. С. 36–47.
Смирнов В. Э., Ханина Л. Г., Бобровский М. В. Расширенная система эколого-ценотических групп видов сосудистых растений для бореальной, гемибореальной и умеренной лесных зон Европейской России. 2008. URL: clck.ru/3WY8H8 (дата обращения: 01.04.2026).
Хорошев А. В., Немчинова А. В., Кощеева А. С., Иванова Н. В., Петухов И. Н., Терентьева Е. В. Ландшафтные и сукцессионные факторы соотношения неморальных и бореальных свойств травяного яруса в заповеднике «Кологривский лес» // Вестник Московского гос. ун-та. Серия 5: География. 2013. № 5. С. 11–18.
De Cáceres M., Legendre P. Associations between species and groups of sites: indices and statistical inference // Ecology. 2009. Vol. 90. No. 12. P. 3566–3574. DOI: 10.1890/08-1823.1
Hsieh T. C., Ma K. H., Chao A. iNEXT: an R package for rarefaction and extrapolation of species diversity (Hill numbers) // Methods in Ecology and Evolution. 2016. Vol. 7. P. 1451–1456. DOI: 10.1111/2041-210X.12613
Ivanova N., Shanin V., Grozovskaya I., Khanina L. Forest vegetation of the northeastern part of the Kostroma region (European Russia). Sampling event dataset. Version 1.3. // Institute of Mathematical Problems of Biology RAS – the Branch of Keldysh Institute of Applied Mathematics of Russian Academy of Sciences. 2018. URL: https://doi.org/10.15468/qemuyc accessed via GBIF.org (01 September, 2026).
Ivanova N. V. Factors limiting distribution of the rare lichen species Lobaria pulmonaria (in forests of the Kologriv Forest Nature Reserve) // Biology Bulletin. 2015. Vol. 42. No. 2. P. 145–153. DOI: 10.1134/S1062359015020041
Ivanova N. V., Shashkov M. P. Tree stand assessment before and after windthrow based on open-access biodiversity data and aerial photography // Nature Conservation Research. 2022. Vol. 7. Suppl. 1. P. 52–63. DOI: 10.24189/ncr.2022.018
Lebedev A. V., Krinitsyn I. G., Ivanova N. V., Chistyakov S. A. Long-term vegetation inventory dataset from the sampling plots in the Kologrivsky Forest Nature Reserve (1979-2022). Sampling event dataset Version 1.3. // FGBU GPZ Kologrivskij Les name after M.G. Sinicin. 2023. URL: https://doi.org/10.15468/9jns3f accessed via GBIF.org (01 September, 2026).
Manly B. F. J. Randomization, bootstrap and Monte Carlo methods in biology. 3rd Edition. New York: Chapman & Hall CRC, 2007. 480 p. DOI: 10.1201/9781315273075
Oksanen J., Simpson G., Blanchet F. Vegan: Community Ecology Package. R package version 2.6-8. 2024. URL: https://CRAN.R-project.org/package=vegan (01 April, 2026).
R Core Team. A Language and Environment for Statistical Computing. R Foundation for Statistical Computing, Vienna, Austria. 2025. URL: https://www.R-project.org/ (01 April, 2026).
Rossi J.-P. rich: An R Package to Analyse Species Richness // Diversity. 2011. Vol. 3(1). P. 112–120. DOI: 10.3390/d3010112
Рецензент: н. с. Басова Е. В.